


发布日期:2026-11-06 来源:中国免疫学会
白血病是怎么发生的:正常造血发育分化中的“异常事件”
白血病是严重危害人类健康的重大疾病之一,在青少年儿童肿瘤死亡原因中位居首位[1];白血病可以被划分为急性白血病和慢性白血病;白血病患者常见的临床表现包括发热、贫血、出血、淋巴结以及肝脾肿大等。因此,向普通大众,尤其是患者及家属,普及“白血病是怎么发生的”这一专业知识,对于他们认识疾病、积极配合医生进行诊疗、最终战胜疾病至关重要。
正常的造血发育从造血干细胞(HSC)开始,经普通髓系祖细胞和普通淋系祖细胞,呈现层级分化模式,最终分化为各类成熟的血细胞;该过程是一条“单向道”,以HSC向髓系发育为例:一旦包括细胞因子和转录因子等在内的“分化信号”引导其向髓系分化,它就会沿着粒细胞、单核细胞或红系的方向逐步成熟,最终失去自我更新能力,成为功能专一的外周成熟血细胞(图1)[2]。
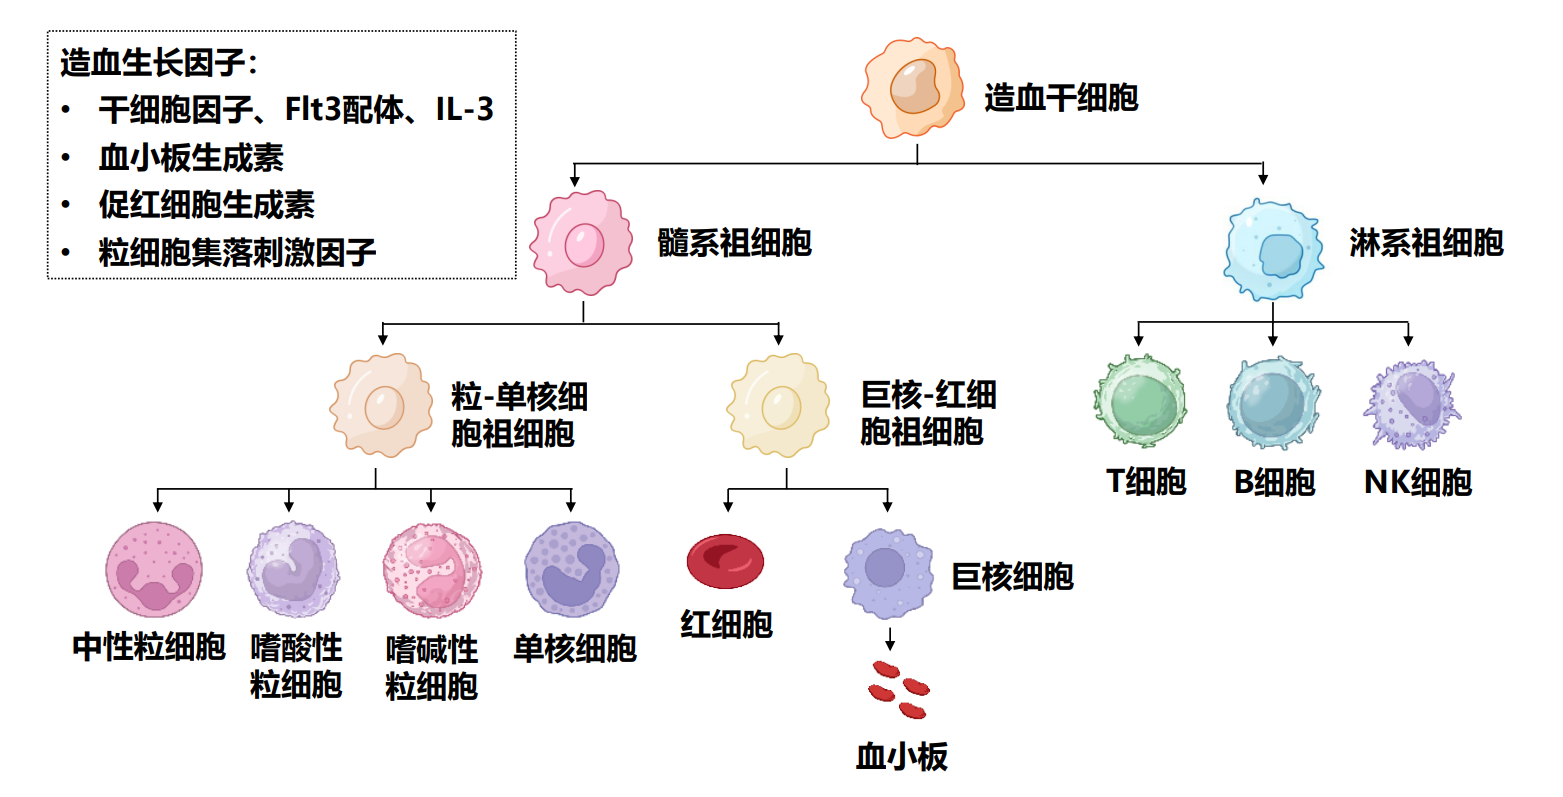
图1. 健康人造血干细胞发育分化模式图。骨髓中的正常造血干细胞在干细胞生成因子、Flt3配体、IL-3以及血小板生成素、粒细胞集落刺激因子等的作用下分化为髓系祖细胞和淋系祖细胞,前者再经粒-单核细胞祖细胞和巨核-红细胞祖细胞分化为成熟的粒细胞、单核细胞、红细胞和血小板,后者分化为T细胞、B细胞和自然杀伤(NK)细胞。
分化阻滞伴增殖失控:造血干细胞发育分化的“命运危机”
白血病细胞形成则打破了“正常造血发育分化”的规则:即正常造血干/祖细胞发育停滞在某个阶段(可以是原始幼稚阶段、也可以是成熟阶段),其正常血细胞功能丧失,却保留了干/祖细胞的自我更新和增殖能力。造血干细胞发育分化的“命运危机”导致白血病发生包括如下几个方面[3-6]:
一、信号转导与增殖异常
典型代表包括 FLT3(内部串联重复或酪氨酸激酶域突变)、KIT、NRAS/KRAS 以及 JAK2 等基因发生突变的白血病类型。这些突变持续激活下游增殖信号,赋予造血干/祖细胞增殖或生存优势,是白血病克隆扩增的重要驱动力。
二、造血转录因子与分化阻滞
该类突变损害髓系分化的正常程序,导致未成熟细胞堆积。核心代表是核心结合因子(CBF)相关的融合基因,如 AML1::ETO(t(8;21))和 CBFB::MYH11(inv(16)),以及 PML::RARA(t(15;17))。这些融合蛋白通过招募转录共抑制复合物(如HDAC、DNMT),抑制下游分化相关基因的表达。以PML::RARA融合基因导致白血病为例,在健康人体内,早幼粒细胞白血病基因(PML)和维甲酸受体α基因(RARA)分别位于 15号和17号染色体,PML主要扮演“守护者”角色,保护细胞免于失控生长和基因组损伤;而RARA则是一位“指令官”,在造血等特定组织中指挥细胞按程序走向成熟分化。如果15号和17号染色体相互易位可形成PML-RARA 融合基因,该融合基因的出现导致HSC向髓系的发育分化阻滞在早幼粒细胞阶段,这些异常细胞逐渐积累,破坏正常造血秩序,最终可能导致急性早幼粒细胞白血病的发生。
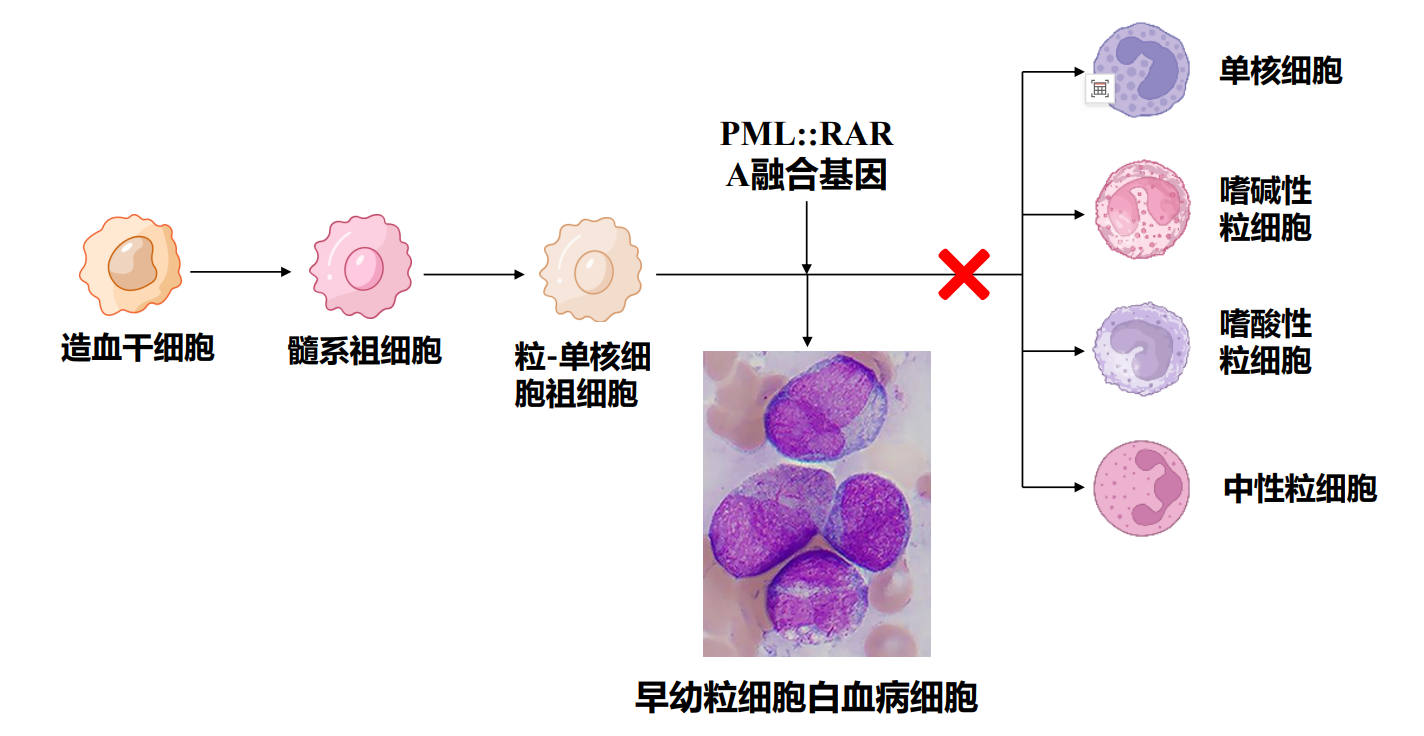
图2. PML::RARA融合基因导致急性早幼粒细胞白血病发生。15号和17号染色体易位形成的PML::RARA融合基因可导致造血干细胞向髓系祖细胞和成熟髓系细胞分化阻滞在早幼粒细胞阶段(红色叉号所示)形成急性早幼粒细胞白血病(见瑞-吉氏染色骨髓涂片)。
三、表观遗传调控异常
该类突变不改变DNA序列,但系统性地重塑基因表达程序,是AML发病机制中极为突出的一类。包括DNA甲基化相关(DNMT3A、TET2、IDH1/2)、组蛋白修饰相关(ASXL1、EZH2、MLL/KMT2A重排)等。其中,NPM1 突变虽不属于经典表观遗传修饰酶,但DNMT3A、TET2或IDH1/2 等表观遗传病变常作为“早期事件”出现在克隆造血阶段,赋予造血干细胞自我更新优势但尚不足以致病;NPM1c 随后作为“晚期门控突变”作用于这些白血病前克隆,将其转化为显性AML,而 FLT3-ITD 等信号突变则进一步协同驱动。
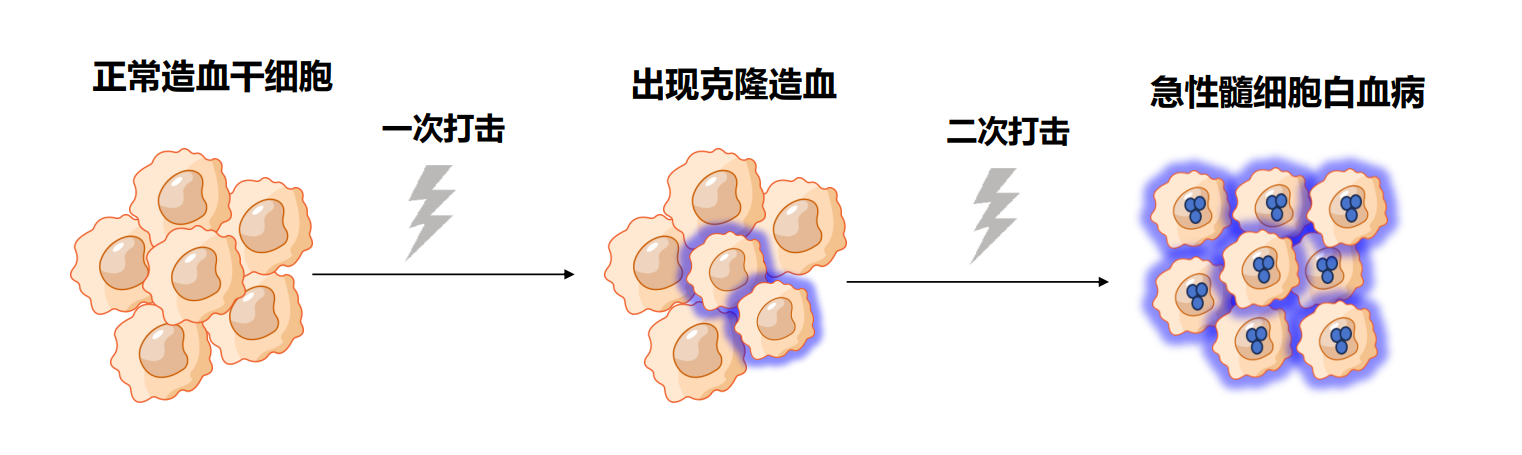
图3. 突变导致急性髓细胞白血病发生模式图。正常造血干细胞发生经历一次打击(如DNMT3A、TET2、ASXL1和IDH1/2突变等)后出现克隆造血细胞,发生克隆造血的细胞经历二次打击(如NPM1突变)后形成急性髓细胞白血病。
此外,RNA剪接因子突变(SRSF2、SF3B1、U2AF1、ZRSR2)导致前体mRNA全局性错接,产生功能异常蛋白异构体或降解关键调控转录本,促进白血病发生。
正常造血发育分化过程中的“异常事件”导致白血病发生
白血病的发生,本质上是正常造血干细胞/祖细胞向成熟细胞发育分化过程中出现了信号转导与增殖异常、造血转录因子与分化阻滞和/或表观遗传调控异常等“异常事件”将一条本应通向成熟血细胞的“单行道”,变成了一条让祖细胞永远无法抵达终点的“死循环”。理解上述“异常事件”的每一个细节,不仅让我们更接近白血病的本质,而且为我们了解白血病的治疗提供了理论基础。”
参考文献
Qi J, Li M, Wang L, et al. National and subnational trends in cancer burden in China, 2005–20: an analysis of national mortality surveillance data. The Lancet Public Health, 2023; 8(12): e943-e955
Laurenti E, Göttgens B. From haematopoietic stem cells to complex differentiation landscapes. Nature,2018;553(7689):418-426
Zhang L, Zhong J, Yang L, et al. The transcription factor HOXA9 induces expression of the chromatin modifier SMYD3 to drive leukemogenesis. J Biol Chem,2025;301(7):110320.
Calderón AS, Ghazanfari R, Masoumi Z, et al. Ontogeny-specific induction of the KMT2A::AFF1-fusion drives development of a distinct CD24 positive pre-leukemic state. Leukemia,2025 Sep;39(9):2099-2111.
Yu H, Hong J, Shin DY, et al. The role of ASXL1, SRSF2, and EZH2 mutations in chromatin dysregulation of myelodysplastic neoplasia and acute myeloid leukemia. Leukemia,2025;39(10):2329-2339.
Kühn MWM, Pemmaraju N, Heidel FH. The evolving landscape of epigenetic target molecules and therapies in myeloid cancers: focus on acute myeloid leukemia and myeloproliferative neoplasms. Leukemia,2025;39(8):1824-1837.
作者:常英军 北京大学人民医院教授
审核专家:王前飞 中国科学院北京基因组研究所教授; 张晓辉 北京大学人民医院教授
- 评论